2010年10月28日 星期四



2010年10月18日 星期一
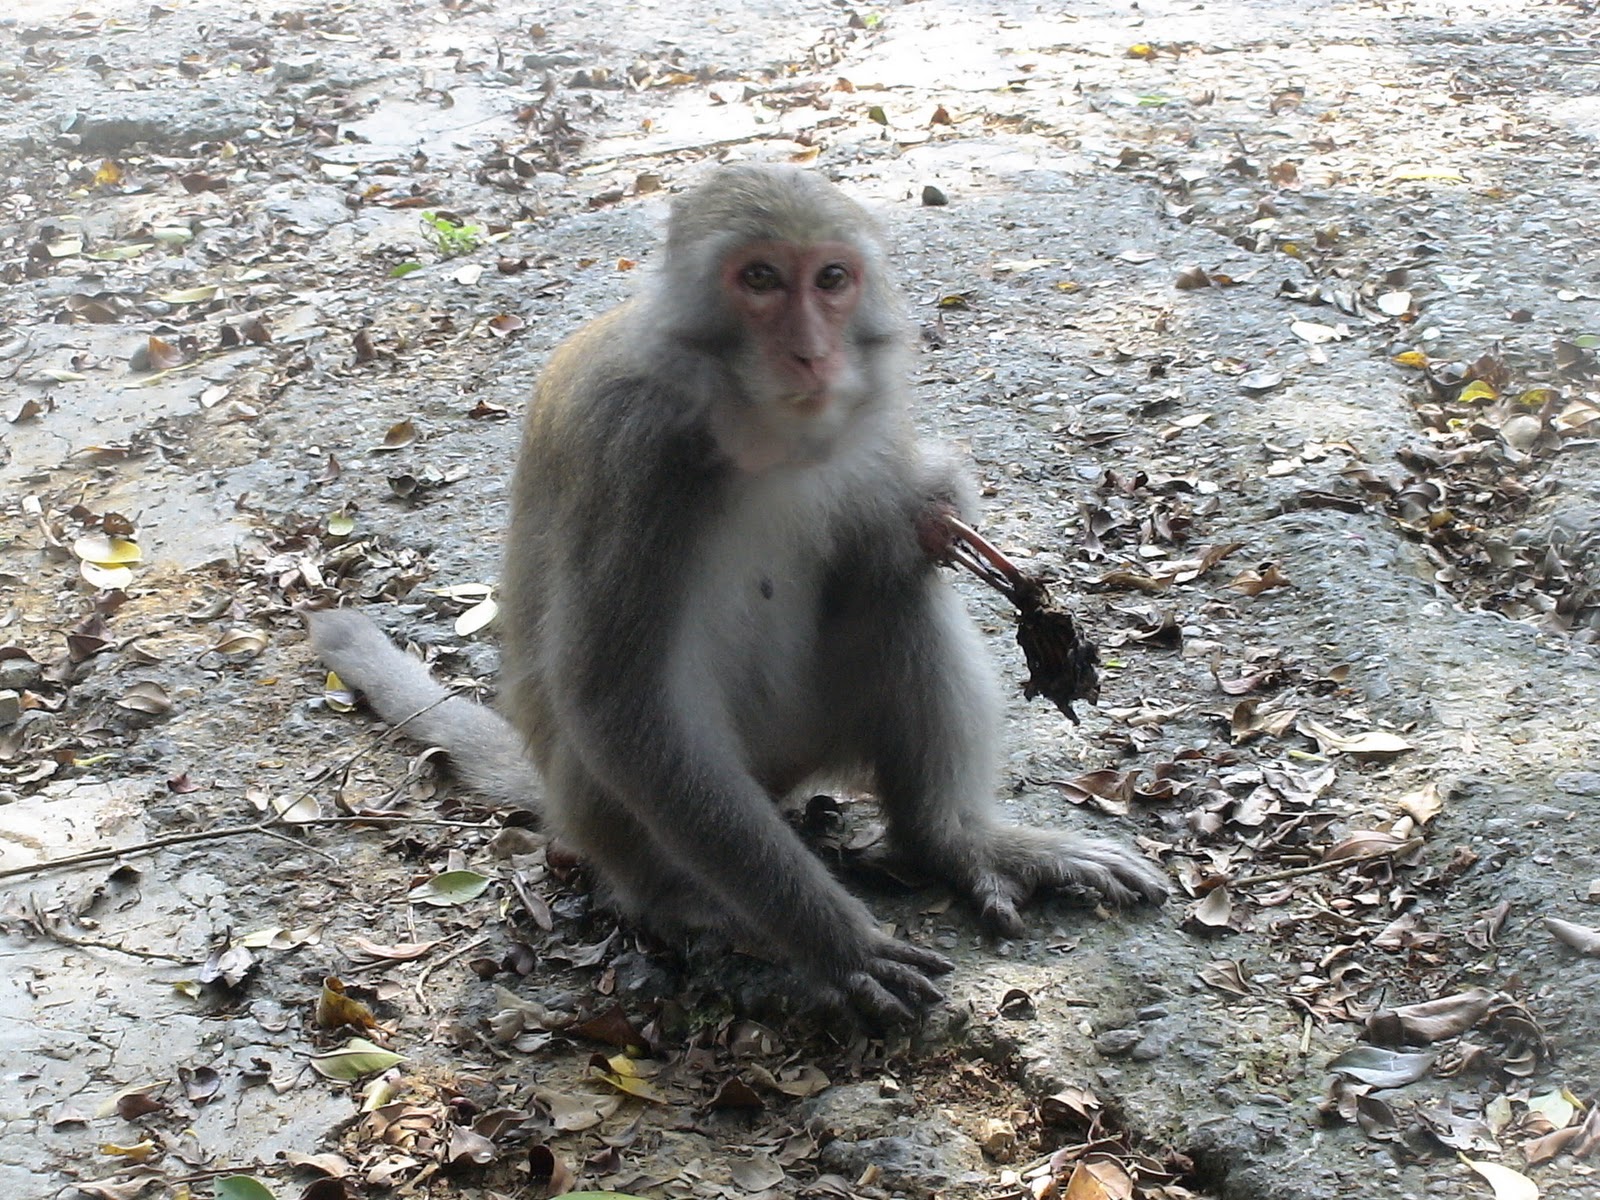
留點空間予壽山臺灣獼猴生存與生活權利吧!
宣告成立壽山國家自然公園之際,信誓旦旦嚴禁濫墾濫伐而保護山林。曾何幾時?如今高雄市政府卻大興土木設置休息椅及指示牌而破壞水土,這些休息椅及指示牌等大多興建在私人私闢的休息區及路線,難道是鼓勵民眾多開多闢而就地合法嗎?,或是圖利特定的對象呢?前車之鑑尚歷歷在目,為何如此健忘呢?
往昔所設置休息椅及指示牌等,如今已是面目全非了,除浪費人民的血汗錢外,並造成諸多的後遺症,如獼猴活動範圍的改變等而不勝枚舉。不論公設(幾乎已被霸佔)或私闢休息區,登山客透早就驅趕及攻擊獼猴而導致下山覓食,又如何增加獼猴入山覓食的機會呢?豈不是自打嘴巴而自相矛盾呢?
眼前的事實而不見相關單位取締,就如僱工驅趕獼猴一般,難道說是沿襲前朝政策,還是轉移焦點呢?20年的浩劫已造成壽山地區滿目瘡痍而有如「骨瘦如柴」般,懇請高雄市政府省思再省思吧!保育團體何在?為何視若無睹呢?回想十幾年前,高雄市政府興建涼亭及木棧道時,而反對聲不斷?但也隨即消聲匿跡了。為何呢?大家心知肚明!保育並不是「寶玉」,而是「假」的瑰寶?只是虛有其表而各有所求吧!
往昔的獵捕壽山獼猴而所造成的傷害已是無法彌補了,如今高雄市政府又在誘捕獼猴,並藉其「累犯」之名而終身禁錮,然而壽山動物園的環境有如牢獄,真是無語問蒼天。高雄市政府憑議會通過的自治條例,就能無法無天的誘捕及獵捕嗎?又規劃部份地區為獼猴保護區,為何又不補助當地果農的損失呢?官方點燈放火,百姓豈不有樣學樣呢?我真佩服壽山地區「荒廢」果園的主人,其果園是獼猴的天堂,並減少獼猴中毒的機會。
2010年10月14日 星期四
臺灣獼猴小檔案
臺灣獼猴(Macaca cyclopis)是獼猴屬(Macaca)中的物種,社群的架構由多支親緣家庭系統所組成的母系社(Matrilinealsociety),雌猴間存在著嚴密的血緣關係及階級制度。社群中雌性成員是留在出生社群內的母群,成年雌性成員是社群結構的穩定社會基礎,其階級架構分為高、中和低階位序,依三階層分為1:2:2的基本比例。一般而言,子代雌猴會承襲親代雌猴的位階,壽山地區獼猴目前子代雌猴(第二個女兒) 承襲高位階(俗稱大媽或皇后)有36群,然經過時間的挪移而由中、低位階篡升為高位階者有6群,其篡升發動者大多是子代雌猴。臺灣獼猴穩定的社會結構除以雌性成員外,社群中有1至數10隻之成年(≧6 years)及亞成年(4-5≦years)雄性成員所組成。
壽山地區獼猴族群是以邏輯成長模式,社群之大小結構依社群內成員組成,社群數>50隻以上則為L社群(30至50≦隻則為M社群,30≦隻以下則為S社群)。在獼猴的社會行為中,分群行為(troop fission)於壽山地區是較常見的行為,目前形成完整且能繁衍後代,並擁有獨立生存與活動的領域及維持穩定的雌雄個體數量的新社群有35群,其中21群屬於M社群而有14群則屬於S社群的負成長。分群後的新社群亦由多支親緣家庭系統所組成的母系社(目前只有1社群是單支親緣家庭),分群後雌猴位階重新「洗牌」,先離群的雌猴通常為高位階。
成年雄性成員的高低階級的排序,通常以個體遷入社群先後時間的順序為主,並以社群內成員間互動之距離、休息、警戒位置、覓食分組、回夜宿地次序或位置及個體之職責來判定彼此間位階的高或低。依獼猴社會階級制度而其位階順序為核心雄猴(俗稱猴王)、群內雄猴、群外雄猴、群外孤猴及流浪孤猴等;亞成年雄猴常於交配季(9-翌年2月)之前奏,離開出生群而移入牠社群而組成雄性單性群(周邊雄猴),周邊雄猴再離群為群外孤猴的歷練,才有機會晉為群內、外雄猴或直接為核心雄猴(大多發生於新社群-分群)。核心雄猴位於社群位置的核心,其旁大多是高位位階雌猴,而群內、群外雄猴則形成△型位置與距離的保護、警戒及雄性單性群於四周警戒。
壽山地區獼猴妊娠期約為156天,核心雄猴擁有交配及食物的優先權,高位階成年雌猴也有交配選擇權,核心雄猴在位期間的平均任期低於3年,離群之前,先短暫地待在原社群,爾後即遷出。核心雄猴更替,大多發生於交配季而高於非交配季(3-8月),交配季也是成年雄猴於社群內的過客。核心雄猴更替的主要因素,在於社群內高位階成年雌猴的接納權及避免近親交配的自然機制,因而核心雄猴的產生是依成年雄猴遷入社群的時間先後順序之群內、外雄猴晉升為核心雄猴的倫理次序,並不是靠打鬥而產生猴王的刻板印象。
交配季是成年雄猴遷出原社群而移入牠社群的頻繁期,成年雌猴於9月初發情者,大多是去年未生育或有生育而其嬰猴死亡的。交配季前期(9-10月)只有核心雄猴跟隨著發情的雌猴,發情雌猴是高位階者於社群內交配,並發出叫聲;如是低位階者則於社群外交配或離群約會,交配季後期(翌年1-2月)亦是如此。交配季巔峰期(11-12月)群內、外雄猴或群外、流浪孤猴及雄性單性群多有交配的對象而個個皆舉尾(群外、流浪孤猴終年舉尾而核心雄猴與任期長或短有關而不一定舉尾),雌猴也有選擇的對象,此時無論社群內或外的交配聲而此起彼落。通常交配時間平均為8-10秒而雄猴連續抽動約為13-15次,如期間有停頓時可達33秒的最高記錄。交配季成年雄猴為了爭交配權,是最容易受傷的,此時常見受傷者大量地食土,及於生育期(3-7月)雌猴生育嬰猴後亦是如此,獼猴受傷後也會大量地取食藥用植物。
辨識成年雌、雄猴的性別,除一些特有的器官外,最大的差異在於頭頂的形狀。雌猴性成熟於滿3歲,其尾臀部會腫脹,約有6成者於隔年生育嬰猴,尾臀部的腫脹會消失而性皮膚才會呈現出泛紅色(俗稱紅屁股),而成年雄猴於滿8歲後性皮膚才會呈現出淡紅色。成年雌猴隨著年齡的增長,性皮膚逐漸擴大並成暗紅色而且皺摺會加深;成年雄猴性皮膚則成深紅色而且生殖器官的表層也會呈現出泛紅色。壽山地區獼猴有9種不同的臉型特徵,面貌的特徵是具有遺傳性,有天生的臉紅或臉白。交配季發情者,無論成年雌猴、雄猴臉面都會變為更紅,於冬季較冷時亦會如此。
雌猴4歲,雄猴5歲前尾部長於身長;雌猴5歲,雄猴6歲時尾長等於身長;雌猴6歲,雄猴7歲以後尾部停滞成長而身長則隨著年齡的增長而身長長於尾長,臉的長度亦會隨著年齡的增長。雌、雄猴5歲前的年齡等於其體重,6歲以後體重隨著年齡的逐漸增重,於10-18歲間體重大多維持在9-11公斤,18歲以後體重會下降1-2公斤,身體會呈現駝背現象,雌、雄猴約10歲其手指與腳趾之指甲會呈現出白指甲的現象。雌猴18歲以後少有生育,如有懷孕也大多會流產,壽山地區雌猴也存在著不孕症。壽山地區雌猴每年都會生雙胞胎,目前紀錄有88對,其中有4隻雌猴隔年亦生雙胞胎,但雙胞胎嬰猴的存活率極低,目前只有1對嬰猴存活。
獼猴生下來的嬰猴即有牙齒並緊緊地抓緊母猴,三個月後會騎在母猴背上。牙齒的排列與人類一樣,手指與腳趾都有指紋而每隻皆不同,手指與腳趾的食指(食趾)長於無名指(無名趾)是與人類不同之處,是呈弧形而利於攀爬。獼猴的前肢比後肢短,通常四肢著地前進,遇危險逃離時則呈跳躍的奔跑,但警戒或聽察狀況往往站立而直行或上樹察望,所以獼猴聽覺的靈敏度比視覺強。各地區的氣候、地形等皆不同,壽山地區獼猴行進、嬉戲時皆於地面活動;警戒、進食時於樹上或岩石上,人類卻強佔獼猴的棲息處及路權,所以獼猴最大的天敵是人類。
雌、雄猴都會換毛,成年雌、雄猴換毛情況特別明顯。雄猴換毛開始自6月至9月止;雌猴換毛開始自7月至10月止,彼此間相差約1個月。雌、雄猴換毛的順序自尾巴開始,然後是頭頂,最後才是身軀。所以於9月的成年雄猴看起來特別雄糾糾而昂首闊步,其因在於粗壯多毛及9月進入交配季。成年雌、雄猴換毛提前約1個月換成,可欲測今年的冬季會特別寒冷,有些成年雌猴由於抱嬰猴的關係,其毛會變得較稀稀疏疏,有時身體部份區塊會脫毛。
獼猴天生是雙眼皮,只是深或淺的不同。雌猴的生殖器位於胼胝坐骨之前,而雌猴的生殖器位於胼胝坐骨之間。胼胝坐骨於1歲後才會變硬,隨著年齡的增長會愈來愈硬而擴大。胼胝坐骨是沒有神經和血管,坐在珊瑚礁上觀望的獼猴定是成年雌、雄猴。獼猴顎骨下方的頰曩是儲存食物的器官,會用手、肩頭推或頂出頰曩內的食物而慢慢細譑嚼。獼猴尾巴有一定的功能,但成年雌猴的尾巴卻另有阻擋與成年雄猴交配的作用。
壽山地區嬰猴於1個月內死亡最高,嬰猴死亡而其母猴會緊抱屍體3-5天(視氣候),母猴絕不會啃食嬰猴屍體,是不捨地一直在舔並驅趕蒼蠅或寄生蟲。嬰猴1個月後即能食葉、果實等並練習攀爬,3個月後嬰猴聚在一起活動、嬉戲,其四周會有成年雌、雄猴於旁照顧,5個月後跟隨社群移動是獨立行為的開始。雌、雄猴在成長過程中,死亡率雄猴高於雌猴,1998年前成年雌、雄猴性比為1:1,由於獵捕及政策等因素而造成目前性比為3.6:1。除造成交配型式的改變外,對壽山地區獼猴的基因庫有一定的影響,如嬰猴的死亡率逐年提高。成年雌、雄猴的平均壽命約21歲,亦有較長壽者,目前成年雌猴有7隻而成年雄猴有3隻。
獼猴死亡的場所於夜宿地附近,由於地形及周遭環境等的因素,不容易見到獼猴屍體,而且屍體的臭味只有約3天,即被螞蟻及落葉等覆蓋。壽山地區獼猴棲息在桑科植物下,並不是住在洞穴。黎明起行時,即先食桑科植物的葉及吸取葉上的露水。獼猴喜在下雨時淋雨並兼洗澡,有水池地喜戲水並潛泳。獼猴冬天棲息在背風面及向陽處,聚在一起晒太陽而取暖。
終年以桑科植物為主食,以食葉為主,季節有果實時則大快朵頤,如春季食構樹、盤龍木等;夏季食龍眼、馬樱丹等;秋季食木虌子、山棕、等;冬季食銀合歡、王瓜等。偶而食少部份的叩頭蟲、白蟻成蟲或鳥蛋等對未成熟的果實會咬一口而丟棄,並不是浪費食物而待果實成熟後再食及傳播種籽。壽山地區植物林相分布均勻,季節性不會改變獼猴活動範圍,唯在每年的七、八月才會改變部份社群的活動範圍。在可食性野生植物(目前登錄約320種)充裕及活動領域重疊下,各社群能共享食物、領域及共同警戒人類及威脅性的動物而和諧共存。
雄猴自亞成猴後,即終生在各社群間遷出或遷入,對可食性野生植物的分布及環境的熟悉度高於雌猴,而且雄猴熟識彼此的實力。社群間相遇時,弱社群會主動避開強社群,但會保持一定的距離約10-20公尺;旗鼓相當的社群相遇時也會保持一定的距離約5-10公尺。如發生衝突時,大多是成年雌猴與雌猴間的對峙,成年雄猴於旁觀望而偶有往前衝,其他成員則於社群後吶喊助陣。
臺灣獼猴習性於21種獼猴中是最溫馴的,個體智商每隻都不同,聰明才智則隨著年齡的增長,年紀愈大與人類的互動愈親近。壽山地區臺灣獼猴有辨識親、疏的能力,對不熟識、陌生人會逃避或威嚇,並不會攻擊穿紅衣服或婦孺;對未曾吃過的食物會不吃或聞一聞即丟棄,所以不是獼猴在搶人類的食物,而是人類自食其果,何況野生植物是垂手可得。在食性方面,個體獼猴是有所差異的,也不是所有的獼猴都食一樣的食物(如香蕉),端看此地區生長的植物是否曾吃過,如吃過而產生反作用時(如中毒),個體獼猴見此植物會害怕而逃離,在飲用水方面也會如此。
獼猴生活方式有一定的作息時間,所謂「日出而作,日入而息」。黎明時,在核心雄猴及高位階群內雄猴帶領下,分組離開夜宿地而外出覓食;黃昏時,在高位階群內、外雄猴先行下而回夜宿地。黎明外出覓食發動者是核心雄猴;黃昏回夜宿地發動者是高位階成年雌猴,所以黎明與黃昏的先行者與殿後者是有所差異。
壽山地區臺灣獼猴雙胞胎及受傷
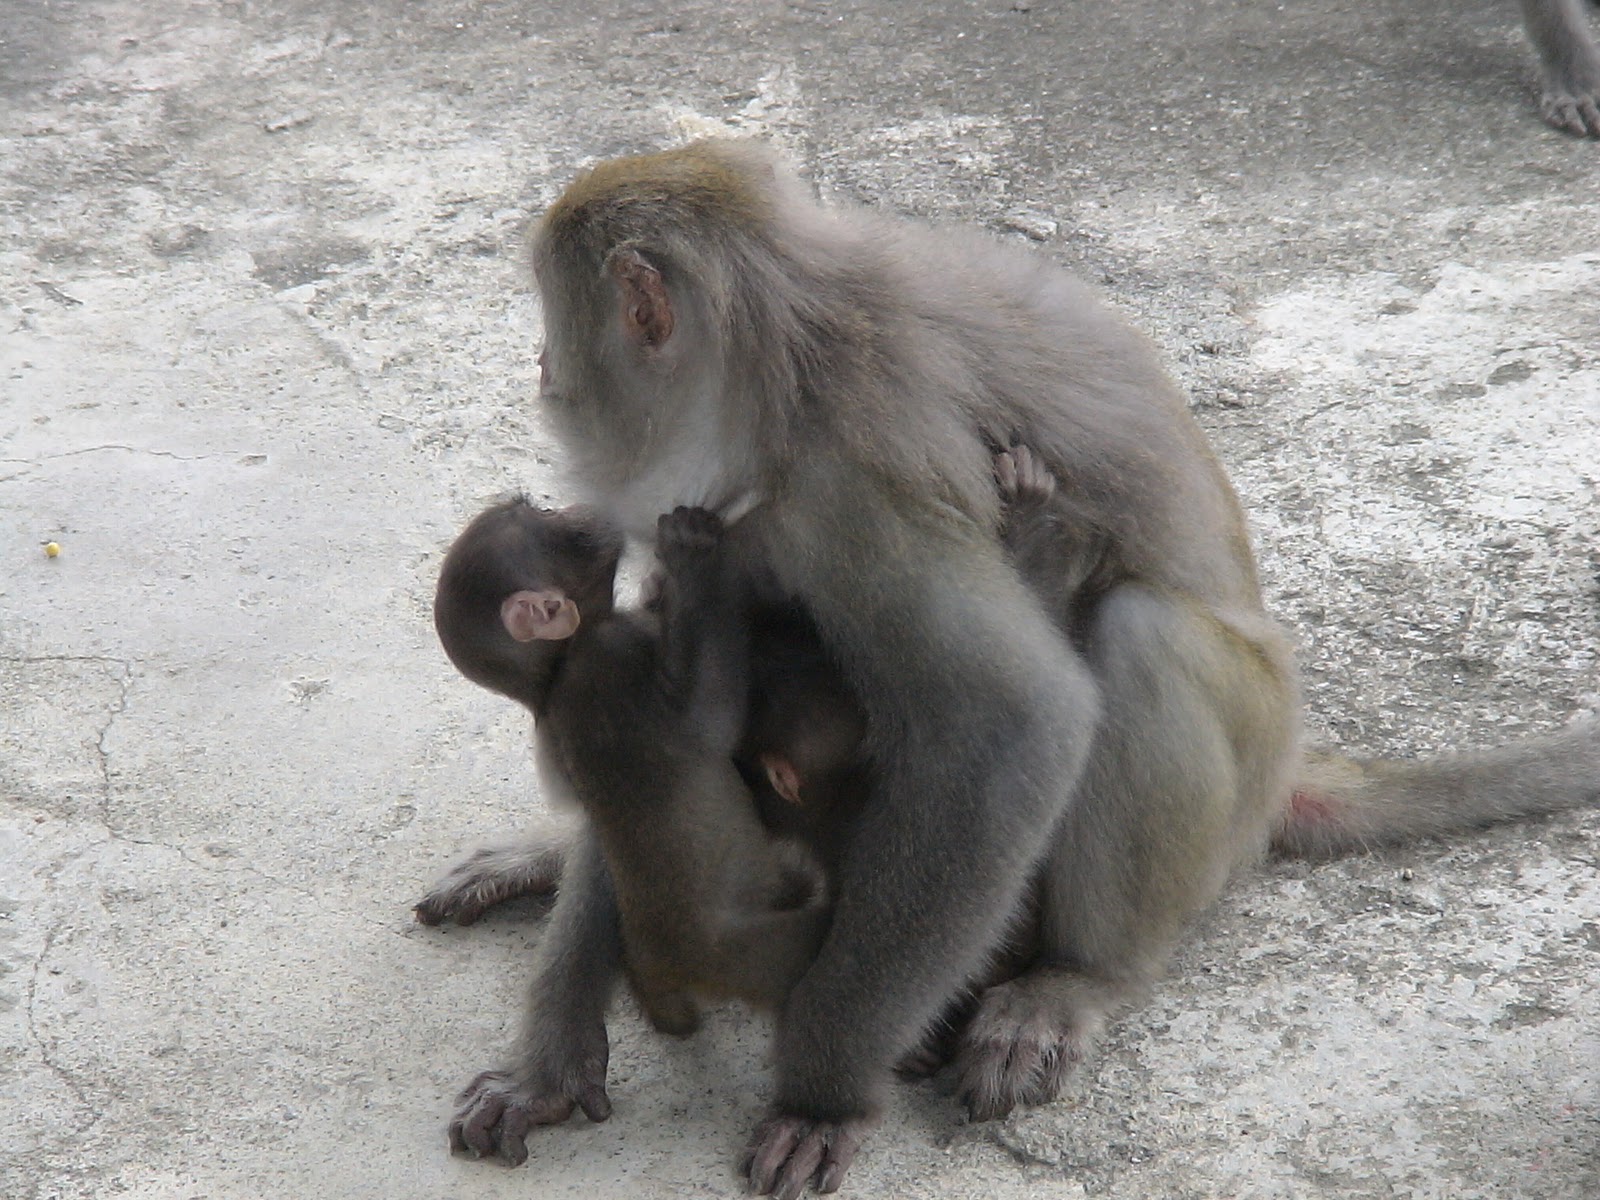

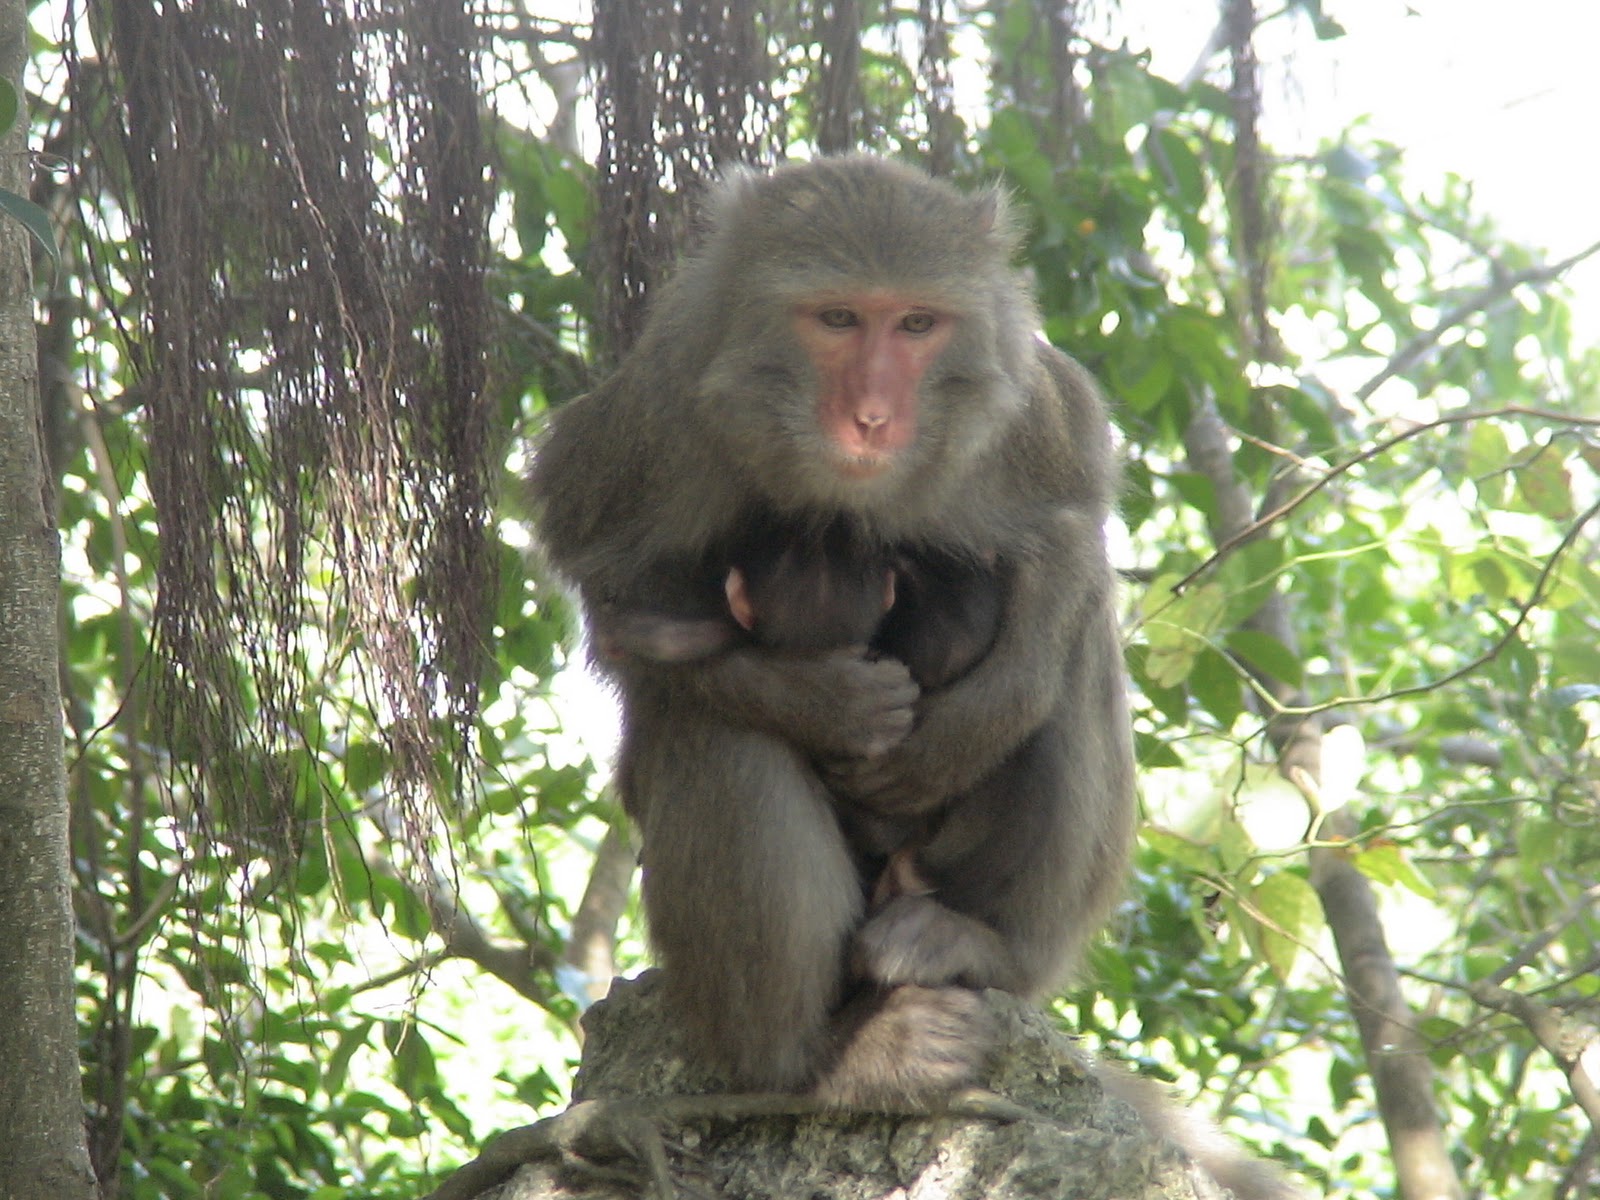


及左腳受傷(2010年)


壽山地區臺灣獼猴手遭捕獸器夾斷(2010年)
2010年10月8日 星期五
壽山臺灣獼猴(Macaca cyclopis)分群的探討p2
結果
從1993年7月至2005年12月31日之野外記錄,研究者共至壽山觀察臺灣獼猴野外紀錄時數共2250天,以焦點取樣、掃描取樣和隨機取樣之完整資料,探討二社群(K主群,I主群)分群過程及形成八旁支群(Kb旁支群,Kc旁支群,Kd旁支群,Ia旁支群,Ic旁支群,Ie旁支群,Ig旁支群,Iaa次旁支群),分群後遷回原主群的有五分群(Ka分群,Kba分群,Kbb分群,Id分群,If分群)及一社群(Ib分群)直接遷入Ia旁支群的過程。
一、分群時機
(一)、分群日期
Ka分群、Kb旁支群、Kc旁支群、Kba分群、Kbb分群、Kd旁支群、Ia旁支群、Ib分群、Ic旁支群、Id分群、Ie旁支群、If分群、Ig旁支群和Iaa次旁支群,由K主群及I主群所分群的日期分別1998年4月7日~1999年11月7日~2000年7月2日~2003年3月15日~2005年2月27日~2005年7月16日~1996年2月3日~1996年8月31日~1998年10月4日~2001年9月30日~2002年12月15日~2003年1月25日~2003年12月6日~2004年12月25日(表 )。
交配季有九社群,佔64.29%(9/14),非交配季則有五社群,佔35.71%(5/14),交配季平均次數為0.9次/年(± 0.9, n=10),非交配季平均次數為0.5次/季(± 0.5, n=10),無顯著的差異(Wilcoxon-Mann-Whitney, P>0.05)(圖 )。以33分群的記錄為樣本數(表 ),25社群於交配季,佔75.00%(25/33),八支社群於非交配季,佔25.00%(8/32),交配季平均次數為2.5次/年(± 2.1, n=10),非交配季平均次數為0.8次/年(± 0.8, n=10),有顯著的差異(Wilcoxon-Mann-Whitney, P<0.05)(圖 ),所以分群多發生於交配季節,造成社群之分群的最佳時機。
(二)、核心雄猴更替過程及年齡
K主群核心雄猴更替在10年內有5次,其分群後形成的旁支群(Kb旁支群,Kc旁支群,Kd旁支群)在10年內有分別為16~13~3次;I主群核心雄猴更替在10年內有9次,其分群後形成的旁支群(Ia旁支群,Ic旁支群,Ie旁支群,Ig旁支群)在10年內有分別為18~21~6~8及Ia旁支群分群後形成的Iaa次旁支群在10年內有5次(表 )。
交配季是核心雄猴更替的頻繁期。十社群核心雄猴更替,核心雄猴更替多發生於交配季佔71.15%(74/104),而非交配季佔28.85%(30/104)。核心雄猴更替平均每群每交配季為0.37次(± 5.1, n=10),在非交配季平均每群為0.15次(± 2.9, n=10),有顯著的差異(Wilcoxon-Mann-Whitney, P<0.05)(圖 )。
二主群與七旁支群和一次旁支群核心雄猴更替頻率差異,而旁支群及次旁支群核心雄猴更替頻率高於主群。二主群與七旁支群和一次旁支群核心雄猴更替在10年內分別為14~90次,核心雄猴更替於主群的平均每群為0.11次(± 0.7, n=10),核心雄猴更替於旁支群的平均每群為0.93次(± 6.5, n=10),有顯著的差異(Wilcoxon-Mann-Whitney, P<0.05)(圖 )。
主群與旁支群核心雄猴更替由本群晉升或他群遷入頻率差異,而旁支群核心雄猴更替由本群晉升或他群遷入頻率高於主群。二主群與七旁支群和一次旁支群核心雄猴更替由本群晉升或他群遷入在10年內分別為7/7~31/49次,核心雄猴更替由本群晉升或他群遷入於主群的平均每群為1.9次(± 1.5, n=10),核心雄猴更替由本群晉升或他群遷入於旁支群的平均每群為3.3次(± 5.7, n=10),有顯著的差異(Wilcoxon-Mann-Whitney, P<0.05)。
主群與與七旁支群和一次旁支群核心雄猴更替時之年齡皆於壯年期(11~17 years)。主群與旁支群及次旁支群核心雄猴更替在10年內分別為14~90次,核心雄猴更替於主群平均每群年齡為14.6歲(± 4.4, n=14),核心雄猴更替於旁支群及次旁支群平均每群年齡為12.4歲(± 4.7, n=90),沒有顯著差異(Wilcoxon-Mann-Whitney, P>0.05)(圖 )。
(三)、成雄猴的遷入與遷出
K主群在10年內社群中成雄猴遷出、入有374次,而其旁支群則分別為143~227~7次;I主群在10年內社群中成雄猴遷出、入有362次,而其旁支群則分別為294~148~86~69及 Iaa次旁支群有38次(表 )。
交配季是社群中成雄猴遷出、入的頻繁期。十社群成雄猴遷出、入,成雄猴遷出、入多發生於交配季佔64.30%(1124/1748),而非交配季佔35.70%(624/1748)。成雄猴遷出、入平均每群每交配季為0.92次(± 10.0, n=60),在非交配季平均每群為0.53次/年(± 7.6, n=52),有顯著的差異(T test, P<0.05)(圖 )。
二、分群型式
(一)、社會結構
K主群與其四分群時社群成員數的比分別為60/8~71/17~74/21~79/8隻;Kb旁支群與其分群時社群成員數的比分別為39/4~51/15隻;I主群與其七分群時社群成員數的比分別為81/10~90/5~102/14~94/20~106/36~74/12~78/15隻及Ia旁支群分群與其次旁支群時社群成員數為39/12隻(表 )。二主群及一旁支群與其分群時社群的成員數佔74.12%(1038/14),其平均數為74隻。
(二)、成雌雄的性比率
K主群與其四分群時社群內成雌雄成員數的比分別為20/8~24/10~19/12~23/9隻;Kb旁支群與其二分群時社群內成雌雄成員數的比分別為11/5~19/9隻;I主群與其七分群時社群內成雌雄成員數的比分別為20/9~22/8~25/18~24/12~29/10~24/8~21/10隻及Ia旁支群與其次旁支群時社群內成雌雄成員數為9/7隻(表 )。
成年雌雄猴性比結果中為2.3:1隻,而成雌性數量高於成雄性。二主群及一旁支群與其分群時,社群中的成雌性數量,佔68.94%(293/425),成雄性數量佔31.06%(132/425),成年雌雄性比為2.2:1(293/132)。成年雌猴於每群平均數量為20.9隻(± 5.5, n=14),成年雄猴於每群平均數量為8.9隻(± 3.6, n=14),有顯著的差異(Wilcoxon-Mann-Whitney, P<0.05)(圖 )。
(三)、成雌生育情形
1、生育子代
在10年內成雌猴架構中的高、中和低階位序之比,K主群成雌所生育子代數之比分別為36/40~50/55~7/11,Kb旁支群分別為23/27~22/25~10/18,Kc旁支群分別為14/19~16/18~13/24及Kd旁支群分別為4/8~4/9~1/1。I主群所生育子代數分別為31/41~40/49~9/16,Ia旁支群分別為9/10~17/28~3/7,Ic旁支群分別為31/36~38/55~5/12,Ie旁支群分別為19/20~22/26~7/10,Ig旁支群分別為18/20~11/14~5/8及Iaa次旁支群分別為8/10~12/20~4/8(表 )。
高位序成雌生育子代數與中位序成雌並無明顯的分別,而與低位序成雌的分別是明顯,其中高位序成雌生育子代數與中低位序成雌並無明顯的分別,而中位序成雌生育子的代數與低位序成雌的分別是明顯。十社群高位序成雌所生育子代數每群平均為1.93次(± 10.9, n=10),中位序成雌生育子代數每群平均為2.32次(± 14.7, n=10),沒有顯著的差異(Wilcoxon-Mann-Whitney, P>0.05),而與低位序成雌生育子代數每群平均為0.64次(± 3.6, n=10),有顯著的差異(Wilcoxon-Mann-Whitney, P<0.05)。
高位序成雌與中低位序成雌生育子代數每群平均為1.48次(± 8.1, n=10),沒有顯著的差異(Wilcoxon-Mann-Whitney, P>0.05),而中位序成雌與低位序成雌生育子代數每群平均為0.64次(± 3.6, n=10),有顯著差異(Wilcoxon-Mann-Whitney, P<0.05)(圖 )。
二主群及四旁支群其成雌所生育的子代數隨著年度而增長。K主群成雌所生育的子代數有隨年度而增長,而其二個旁支群成雌所生育的子代數有隨年度而增長(Simple linear regression, P<0.05)(圖 ),故其(Kb、Kc群)成雌所生育的子代數有隨年度而增長。I主群成雌所生育的子代數沒有隨年度而增長,而其中二個旁支群成雌所生育的子代數有隨年度而增長(Simple linear regression, P<0.05)(圖 ),故其(Ic、Ie群)雌猴所生育的子代數有隨年度而增長。
2、生育間隔
在10年內成雌猴架構中的高、中和低階位序之比,K主群成雌生育子代間隔之比分別為4/40~5/55~4/11,Kb旁支群之比分別為4/27~3/25~8/18及Kc旁支群之比分別為5/19~2/18~11/24,Kd旁支群之比分別為4/8~5/9~0/1。I主群成雌生育子代間隔之比分別為10/41~9/49~7/16;Ia旁支群之比分別為1/10~11/28~4/7,Ic旁支群之比分別為5/36~17/55~7/12,Ie旁支群之比分別為1/20~4/26~3/10,Ig旁支群之比分別為2/20~3/14~3/8及Iaa次旁支群之比分別為2/10~8/20~4/8(表 )。
高位序成雌生育子代間隔與中位序成雌及低位序成雌並無明顯的分別,其中高位序成雌生育子代數與中低位序成雌並無明顯的分別,而中位序成雌生育子的代數與低位序成雌並無明顯的分別。十社群高位序成雌生育子代間隔每群平均次數為0.38次(± 2.7, n=10),中位序成雌生育子代間隔每群平均次數為0.67次(± 4.6, n=10),沒有顯著的差異(Wilcoxon-Mann-Whitney, P>0.05),並與低位序成雌生育子代間隔每群平均次數為0.51次(± 3.1, n=10),沒有顯著的差異(Wilcoxon-Mann-Whitney, P>0.05)。
高位序成雌與中低位序生育子代間隔每群平均次數為0.30次(± 1.4, n=10),沒有顯著的差異(Wilcoxon-Mann-Whitney, P>0.05),而中位序成雌與低位序成雌生育子代間隔每群平均次數為0.51次(± 3.1, n=10),沒有顯著差異(Wilcoxon-Mann-Whitney, P>0.05)(圖 )。
3、嬰猴存活
在10年內成雌猴架構中的高、中和低階位序之比,K主群成雌所生育子代死亡數之比分別為2/36~8/50~0/7,Kb旁支群之比分別為7/23~4/22~4/10,Kc旁支群之比分別為1/14~2/16~7/13及Kd旁支群之比分別為0/4~1/4~1/1。I主群成雌所生育子代死亡數之比分別為4/31~10/40~0/9;Ia旁支群之比分別為1/9~1/17~0/3,Ic旁支群之比分別為7/31~6/38~0/5,Ie旁支群之比分別為1/19~2/22~2/7,Ig旁支群之比分別為2/18~1/11~0/5及Iaa次旁支群之比分別為2/8~5/12~1/4(表 )。
高位序成雌生育子代存活數與中位序成雌及低位序成雌並無明顯的分別,其中高位序成雌生育子代存活數與中低位序成雌並無明顯的分別,而中位序成雌生育子代存活數與低位序成雌的分別是明顯。十社群高位序成雌所生育子代存活數每群平均次數為0.27次(± 2.5, n=10),中位序成雌生育子代存活數每群平均次數為0.40次(± 3.2, n=10),沒有顯著的差異(Wilcoxon-Mann-Whitney, P>0.05);並與低位序成雌生育子代存活數每群平均次數為0.15次(± 2.3, n=10),沒有顯著的差異(Wilcoxon-Mann-Whitney, P>0.05)。
高位序成雌與中低位序成雌生育子代存活數每群平均次數為0.28次(± 1.7, n=10),沒有顯著的差異(Wilcoxon-Mann-Whitney, P>0.05),而中位序成雌而與低位序成雌生育子代存活數每群平均次數為0.15次(± 2.3, n=10),有顯著差異(Wilcoxon-Mann-Whitney, P<0.05)(圖 )。
(四)、成雌體重
研究者於2000年1月1日至2001年12月31日,磅秤壽山地區臺灣獼猴五社群(A群,B群,C群,K群,I群)成員中之成雌猴的個體體重平均為5-9公斤,亞成雌的個體體重平均為4-5公斤。
在2年內成雌猴架構中的高、中和低階位序之比,A社群成雌的個體平均體重之比分別為9.0~7.6~7.6公斤,B社群之比分別為9.0~7.7~7.0公斤,C社群之比分別為9.3~7.4~8.7公斤,K社群之比分別為9.0~7.6~7.6公斤及I社群比分別為8.8~7.2公斤~6.5公斤。
高位序成雌個體平均體重與中位序成雌及低位序成雌的分別是明顯,其中高位序成雌生育子代存活數與中低位序成雌的分別是明顯,而中位序成雌生育子代存活數與低位序成雌並無明顯的分別。五社群高位序成雌個體平均體重9.0公斤(± 0.2, n=5)與中位序成雌個體平均體重7.5公斤(± 0.2, n=5),有顯著差異(Wilcoxon-Mann-Whitney, P<0.05),並與低位序成雌個體平均體重7.5公斤(± 0.8, n=5),有顯著的差異(Wilcoxon-Mann-Whitney, P<0.05)。
高位序成雌與中低位序成雌個體平均體重7.5公斤(± 0.4, n=5),有顯著差異(Wilcoxon-Mann-Whitney, P<0.05),中位序成雌與低位序成雌個體平均體重7.5公斤(± 0.8, n=5),沒有顯著差異(Wilcoxon-Mann-Whitney, P>0.05)。
(五)、分群類型
1、Ka分群類型
1998年4月7日有五隻成雌猴(其序號分別為:K11-8,K 11-16,K 11-17,K 11-19,K 11-23)離開K主群,形成Ka旁支群後,五隻成雌猴(其序號分別為:K11-8,K 11-16,K 11-17,K 11-19,K 11-23)則於1998年5月11日返回K主群而造成Ka旁支群的瓦解,Ka分群於分群期間並無群外雄猴遷入該社群。
2、K-b分群類型
1999年11月7日,有8隻成雌猴(其序號分別為:K 11-2,K 11-4,K 11-9,K 11-13,K 11-14,K 11-15,K 11-17,K 11-20)離開K主群,於1999年11月12日有一隻曾失蹤的雄猴(其序號為K11-27)遷入Kb分群為核心雄猴而形成旁支群。1999年11月21日又有2隻成雌猴(其序號分別為:K 11-21,K 11-23)遷入K-b旁支群。
3、Kc分群類型
2000年7月2日,有8隻成雌猴(其序號分別為:K11-8,K11-16,K11-18,K11-19,K11-23,K11-25,K11-26,K11-32)離開K主群,於2000年7月15日有一隻在K主群為流浪孤猴(其序號為I9-12)遷入Kc分群為核心雄猴而形成旁支群。
4、Kba分群類型
有一隻雄猴(其序號為A1-30)當時在Kb旁支群為雄性單性群中的成員,於2003年3月15日帶領成雌猴3隻(其序號分別為:Kb21-3,Kb21-6,Kb21-8)離開Kb旁支群而形成Kba旁支群。形成Kba旁支群後,一隻成雌猴(其序號為Kb21-6)於2005年3月30日返回Kb旁支群;Kba旁支群一隻成雌猴二隻成雌(其序號分別為:Kb21-3,Kb21-8)於2005年4月9日返回Kb旁支群而造成Kba旁支群的瓦解,該成雄猴(其序號為A1-30)則2005年4月9日遷入Kb旁支群為流浪孤猴。
5、Kbb分群類型
有一隻雄猴(其序號為J10-22)當時在Kb旁支群為雄性單性群中的成員,於2005年2月27日帶領六隻成雌猴(其序號分別為:Kb21-3,Kb21-4,Kb21-8,Kb21-5,Kb21-18,Kb21-23)而形成Kbb旁支群。形成Kbb旁支群後,一隻成雌猴(其序號為Kb21-8)於2005年5月7日返回Kb旁支群;Kbb旁支群一隻成雌猴(其序號為Kb21-4)於2005年6月18日失蹤而於2005年6月28日反回K-b旁支群;Kbb旁支群四隻成雌猴(其序號分別為:Kb21-3,Kb21-5,Kb21-18,Kb21-23)於2005年7月13日返回Kb旁支群而造成Kbb旁支群的瓦解。Kbb旁支群有一隻雄猴(其序號為J10-23)當時在Kb旁支群為雄性單性群中的成員,於2005年6月28日遷入為核心雄猴,而原核心雄猴(其序號為J10-22)則為群內雄猴,當Kbb旁支群的瓦解後,該二隻雄猴(其序號分別為:J10-23,J10-22)則分別遷入Kb旁支群為群外孤猴。
6、Kd分群類型
有一隻雄猴(其序號為J10-19)於2005年7月16日帶領成雌猴三隻(其序號分別為:K11-24,K11-28,K11-43)離開K主群而形成Kd旁支群。該雄猴(其序號為J10-19)曾於2005年4月遭高雄市政府獵捕,而於2005年6月22日野放,並於2005年7月13日遷入K主群為群外雄猴。
7、Ia分群類型
有一隻雄猴(其序號為I9-4)當時在I主群為群內雄猴,於1996年2月3日帶領三隻成雌猴(其序號分別為:Ia12-2,Ia12-3,Ia12-4)離開I主群而形成Ia旁支群。形成Ia旁支群後,於1996年2月7日有一隻成雌猴(其序號為Ia12-1)由I主群遷入Ia旁支群。
8、Ib分群類型
1996年8月31日有三隻成雌(其序號分別為:I-a12-5,I-a12-6,I-a12-7)直接遷入Ia旁支群。
9、Ic分群類型
有一隻雄猴(其序號為I9-6)當時在I主群為群內雄猴,於1998年10月4日帶領六隻成雌猴(其序號分別為:I9-5,I9-6,I9-17,I9-19, Ic16-3,Ic 16-4)離開I主群而形成Ic分群。形成Ic分群後,該社群是由(其序號為Ic 16-4)為核心領導,而其群內雄猴(其序號為I9-6)於1998年10月24日才晉升為核心雄猴,此時正式形成Ic旁支群。
10、Id分群類型
有一隻雄猴(其序號為I9-31)當時在I主群為群外孤猴,於2001年9月30日帶領七隻成雌猴(其序號分別為:9-3,9-7,9-9,9-22,9-25,9-26,9-35)離開I主群而形成Id旁支群。形成Id旁支群後,七隻成雌猴(其序號分別為:I9-3,I9-7,I9-9,I9-22,I9-25,I9-26,I9-35)於2001年10月14日返回I主群而造成Id旁支群的瓦解,該成雄猴(其序號I9-31)則2005年10月14日遷入I主群為群外孤猴。
11、Ie分群類型
有一隻雄猴(其序號為I9-39)當時在I主群為群外孤猴,於2002年12月15日帶領七隻成雌猴(其序號分別為:I9-4,I9-7,I9-16,I9-18,I9-25,I9-26,I9-35,I9-38)離開I主群而形成Ie旁支群。
12、If分群類型
有一隻雄猴(其序號為I9-46)當時在I主群為群外孤猴於2003年1月25日帶領二隻成雌猴(其序號分別為:I9-22,I9-27)離開I主群而形成If旁支群。形成Id旁支群後,二隻成雌猴(其序號分別為:I9-22,I9-27)於2003年1月29日返回I主群而造成If旁支群的瓦解,該成雄猴(其序號I9-46)則失蹤。
13、Ig分群類型
有四隻成雌猴(其序號分別為:I9-9,I9-2,I9-22,I9-32)於2003年10月4日離開I主群而歸附於Ie旁支群。有一隻雄猴(其序號為I9-36)當時在Ce旁支群為群外孤猴,於2003年12月6日帶領五隻成雌猴(其序號分別為:I9-9,I9-2,I9-22,I9-32,I9-47)離開Ie旁支群而形成Ig旁支群。
14、Iaa分群類型
有一隻雄猴(其序號為Ia12-44)當時在Ia旁支群為群外孤猴,於2004年12月25日帶領三隻成雌猴(其序號分別為:Ia12-2,Ia12-4,Ia12-14)離開Ia旁支群而形成Iaa次旁支群。綜合上述七旁支群及一次旁支群的分群經過,可歸納壽山地區臺灣獼猴分群現象和模式有下列七種:
1、分群直接由成雌猴離開原社群者的有Ka分群。
2、分群由成雌猴先離開原社群(分批或整批離群),雄猴再遷入者的有Kb旁支群,Kc旁支群。
3、分群由群外雄猴帶領成雌猴離開原社群者的有Kd分群。
4、分群由周邊雄猴帶領成雌猴離開原社群者的有Kba分群,Kbb分群,Id分群,Ie旁支群,If分群,Iaa次旁支群。
5、分群由群內雄猴帶領成雌猴離開原社群者的有Ia旁支群,Ic旁支群。
6、分群由群內成雌直接遷入旁支群者的有Ib分群。
7、分群由群內成雌先歸附旁支群,他群周邊雄猴帶領成雌離開旁支群者的有Ig旁支群。
研究者記錄35分群過程,除與上述七種模式外,另有二種模式。一分群模式是由G社群中群內雄猴,帶領三隻成雌猴直接遷入Ba旁支群。另一分群模式是O主群有二隻成雌猴先離開O主群,約八個月後直接融入至Na旁支群,因而壽山地區臺灣獼猴分群的現象目前有九種模式。
三、旁支群成員組成與變動
(一)Kb旁支群成員組成與變動
1999年11月7日,有八隻成雌猴(其序號分別為:K11-2,K11-4,K11-9,K11-13,K11-14,K11-15,K11-17,K11-20),攜其親緣關係亞雄單群的成員一隻,雄幼猴三隻及雄嬰猴三隻而共同離開K主群。1999年11月12日有一隻曾失蹤的雄猴(其序號為K11-27)遷入Kb分群為核心雄猴而形成Kb旁支群。
在形成Kb旁支群後,1999年11月21日有二隻成雌猴(其序號分別為:K11-21,K11-23)於由K主群遷入Kb旁支群。1999年12月25日日有一隻成雌猴(其序號為K11-21)返回K主群;2000年1月8日該成雌猴(其序號為K11-21)遷入Kb旁支群;2000年1月30日該成雌猴(其序號為K11-21)又返回K主群;2000年8月26日該成雌猴(其序號為K11-21)又遷入Kb旁支群。成雌(K主群序號為11-23)於1999年12月25日返回K主群。有一隻亞成雌(其序號為K11-46)於1999年12月5日由K主群遷入Kb旁支群,而其親緣家庭皆在K主群。
在形成Kb旁支群後,核心雄猴(其序號為K11-27)於1999年11月28日失蹤。1999年11月21日,有一隻雄猴(其序號為A1-2)當時在K主群為群外雄猴,遷入Kb旁支群為群內雄猴,而於1999年11月28日晉升為核心雄猴。
有一隻成雌猴(其序號為K11-14)所生的嬰猴,於1999年11月7日離K主群時當日死亡。有三隻成雌猴(其序號分別為:K11-2,K11-9, K11-20)所生的嬰猴在形成Kb旁支群後,分別於1999年12月26日、1999年12月26日及2000年2月6日死亡。
(二)Kc旁支群成員組成與變動
2000年7月2日,有八隻成雌(其序號分別為:K11-8,K11-16,K11-18,K11-19,K11-23,K11-25,K11-26,K11-32),攜其親緣關係亞雄單群中的成員一隻,雄幼猴四隻,雌幼猴三隻,雄嬰猴三隻及雌嬰猴一隻離開K主群。有一隻雄猴(其序號為I9-12)當時在K主群為流浪孤猴,於2000年7月15日遷入Kc分群為核心雄猴而形成旁支群。
在形成旁支群後,2000年8月5日有一隻成雌猴(其序號為K11-22)由K主群遷入Kc旁支群,此成雌猴於1999年4月7日不知由何群遷入K主群。2000年8月8日有一隻成雌猴(其序號為K11-26)攜其女兒(其序號為K11-47)返回K群。有一隻成雌猴(其序號為K11-18)所生的嬰猴在離開K主群前,已於2000年6月10日死亡。
(三)Kd旁支群成員組成與變動
有一隻雄猴(其序號為J10-19)曾於2005年4月遭高雄市政府獵捕,而於2005年6月22日野放,並於2005年7月13日遷入K主群為群外雄猴。於2005年7月16日帶領成雌猴三隻(其序號分別為:K11-24,K11-28,K11-43)及其親緣關係亞雄猴一隻及雌幼猴一隻離開K主群而形成Kd旁支群。2005年8月27日有一隻成雌猴(其序號為K11-50)由K主群遷入Kb旁支群。
在形成Kb旁支後,其中有一隻成雌猴(其序號為K11-28)的親緣家庭皆於K主群。有一隻成雌猴(其序號為K11-28)所生的嬰猴在離開K主群前,已於2005年5月28日死亡;一隻成雌猴(其序號為K11-50)所生的嬰猴於離主K主群時當日死亡。
(四)Ia旁支群成員組成與變動
1996年2月3日,有一隻雄猴(其序號為I9-4)當時在I主群為群內雄猴,帶領三隻成雌猴(其序號分別為:Ia12-2,Ia12-3,Ia12-4)及其親緣關係雄幼猴四隻及雌幼猴一隻離開I主群而形成Ia旁支群。
在形成Ia旁支群後,1996年2月7日有一隻成雌猴(其序號為I-a12-1)攜其親緣關係雄幼猴一隻,雌幼猴二隻及雌嬰猴一隻由I主群遷入Ia旁支群。
在形成Ia旁支群後,有一隻雄猴(其序號為I-a12-1)當時在Ia旁支群為群外孤猴,於1996年3月4日遷入Ia旁支群為核心雄猴,而原核心雄猴(其序號為I9-4)則為群內雄猴。
在形成Ia旁支群後,1996年8月31日有三隻成雌猴(其序號分別為:Ia12-5,Ia12-6,Ia12-7)攜其親緣關係雄嬰猴一隻及雌嬰猴一隻直接遷入Ia旁支群。1998年4月19日,有一隻成雌猴(其序號為Ia12-8),攜其親緣關係雌嬰猴一隻由I主群遷入Ia旁支群。
(五)Ic旁支群成員組成與變動
1998年10月4日,有一隻雄猴(其序號為I9-6)當時在I主群為群內雄猴,帶領六隻成雌猴(其序號分別為:I9-5,I9-6,I9-17,I9-19, Ic16-3,Ic 16-4)及其親緣關係亞雄單群中的成員一隻,雄幼猴二隻,雌猴三隻及雄猴一隻離開I主群而形成Ic分群。形成Ic分群後,該社群是由(其序號為Ic 16-4)為核心領導,而其群內雄猴(其序號為I9-6)於1998年10月24日才晉升為核心雄猴,此時正式形成Ic旁支群。
在形成Ic旁支群後,1998年12月5日有二隻成雌猴(其序號分別為:I9-1,I9-15)由I主群遷入Ic旁支群。
在形成Ic旁支群後,1999年1月3日有一隻成雌猴(其序號為I9-14)由I主群遷入I-c旁支群;1999年1月23日該成雌猴(其序號為I9-14)由Ic旁支群返回I主群;1999年1月27日該成雌猴(其序號為I9-14)由I主群又遷入Ic旁支群。
在形成Ic旁支群後,1999年1月1日有一隻成雌猴(其序號為I9-20)由I主群遷入Ic旁支群;1999年1月23日該成雌猴(其序號為I9-20)由Ic旁支群返回I主群;1999年1月27日該成雌猴(其序號為I9-20)由I主群又遷入Ic旁支群。2000年6月5日有一隻幼雌猴(其序號為I9-67)是成雌猴(其序號為I9-19)由I主群遷入Ic旁支群。
有四隻成雌猴(其序號分別為:I9-17,I9-19,Ic16-3,Ic16-4)所生的嬰猴於離開I主群之前,分別於1998年5月23日、1998年6月7日、1998年5月16日及1998年5月13日已死亡。有二隻成雌猴(其序號分別為:I9-14、 I9-20)所生的嬰猴在遷入和返回過程中,分別於1998年12月4日及1999年1月3日死亡。
(六)Ie旁支群成員組成與變動
2002年12月15日,有一隻雄猴(其序號為I9-39)當時在I主群為群外孤猴,帶領七隻成雌猴(其序號分別為:I9-4,I9-7,I9-16,I9-18,I9-25,I9-26,I9-35,I9-38)及其親緣關係亞雄單群中的成員四隻,雄幼猴九隻,雌幼猴五隻,雄嬰猴三隻及雌嬰猴三隻離開I主群而形成Ie旁支群。
在形成Ie旁支群後,有一隻雄猴(其序號為I9-40)當時在Ic旁支群為群內雄猴,於2002年12月28日遷入Ie旁支群為群內雄猴;有一隻雄猴(其序號為M13-5)當時在I主群為群外雄猴,於2002年12月28日遷入Ie旁支群為群內雄猴;有一隻雄猴(其序號為C3-2)當時在I群為群外雄猴,於2002年12月28日遷入Ie旁支群為群外孤猴。
在形成Ie旁支群後,有二隻成雌猴(其序號分別為:I9-4,I9-18)之母親(其序號I為9-3)及妹妹(其序號為I9-27)則留在I主群而未遷出;有一隻成雌猴(其序號為I9-7)之女兒(其序號I為9-22)則留在I主群而未遷出。
(七)Ig旁支群成員組成與變動
有四隻成雌猴(其序號分別為:I9-9,I9-2,I9-22,I9-32)於2003年10月4日離開I主群而歸附於Ie旁支群。2003年12月6日,有一隻雄猴(其序號為I9-36)當時在Ce旁支群為群外孤猴,帶領五隻成雌猴(其序號分別為:I9-9,I9-2,I9-22,I9-32,I9-47)及其親緣關係亞雄猴一隻,雄猴二隻,雌幼猴四隻及雄嬰猴一隻離開Ie旁支群而形成Ig旁支群。
在形成Ig旁支群後,有一隻雄猴(其序號為Aa8-2)當時在由Ie旁支群為群外雄猴,2004年12月20日遷入Ig旁支群為群內雄猴。有一隻成雌猴(其序號為I9-27)及其所生的嬰猴,於2004年4月9日由I群遷入Ig旁支群;2004年5月5日該成雌猴(其序號為I9-27)及其所生的嬰猴由Ig旁支群返回I主群;2005年12月3日該成雌猴(其序號為I9-27)及其所生的嬰猴由I主群又遷入Ig旁支群。
(八)Iaa次旁支群成員組成與變動
2004年12月25日,有一隻雄猴(其序號為Ia12-44)當時在Ia旁支群為群外孤猴,帶領三隻成雌猴(其序號分別為:Ia12-2,Ia12-4,Ia12-14)及其親緣關係雄幼猴二隻,雌幼猴四隻及雌嬰猴一隻,離開Ia旁支群而形成Iaa次旁支群。
在形成Iaa次旁支群後,有一隻雄猴(其序號為J10-13)當時在I-a旁支群為群外雄猴,於2005年12月31日遷入Iaa次旁支群為群內雄猴。
在形成Iaa次旁支群後,2005年1月8日,有一隻成雌猴(其序號為Ia12-13)攜帶其女兒由Ia旁支群遷入Iaa次旁支群。
在形成Iaa次旁支群後,2005年3月12日有一隻成雌猴(其序號為Ia12-6)由Ia旁支群遷入Iaa次旁支群。
在形成Iaa次旁支群後,2005年4月2日有一隻成雌猴(其序號為Ia12-10)由Ia旁支群遷入Iaa次旁支群,2005年4月5日該成雌猴(其序號為Ia12-10)由Iaa次旁支群返回Ia群,2005年4月23日該成雌猴(其序號為Ia12-10)由Ia旁支群又遷入Iaa次旁支群。
在形成Iaa次旁支群後,2005年5月21日一隻成雌猴(其序號為Ia12-19)攜帶其女兒由Ia群遷入Iaa次旁支群。
在形成Iaa次旁支群後,有一隻成雌猴(其序號為Ia12-10)之母親(其序號為Ia 12-1)和姊姊(其序號為Ia 12-9)則留在Ia旁支群。有一隻成雌猴(其序號為Ia 12-6)所生的嬰猴於離Ia旁支群之前,已於2004年11月6日死亡。2005年12月10日有一隻成雌猴(其序號為Ia 12-2)死亡,而其所生的嬰猴則存活。
社群分群的過程中,在形成旁支群後,成雌猴所生的嬰猴共有十三隻死亡,而其中有九隻是在分群前即已死亡。在形成旁支群後,成雌猴有一隻或數隻返回原主群和旁支群間、或成雌猴彼此間具有親緣的母女、姊妹關係,有的留於主群或遷入旁支群及返回原主群和旁支群間。
四、分群前後成年雌猴之位序變化
Kb分群於1999年11月7日形成旁支群後,有十隻成雌猴(其序號分別為:K11-2,K11-4,K11-9,K11-13,K11-14,K11-15,K11-17,K11-20,K11-21,K11-23),依成雌猴架構中的高、中和低階位序之比為(2/4/4),並造成K主群成雌猴架構中的高、中和低階位序的變動之比為(5/10/9)。
Kc分群於2000年7月2日形成旁支群之後,有八隻成雌猴(其序號分別為:K11-8,K11-16,K11-18,K11-19,K11-23,K11-25,K11-26,K11-32),依成雌猴架構中的高、中和低階位序之比為(1/4/3),並造成K主群成雌猴架構中的高、中和低階位序的變動之比為(4/8/7)。
Kd分群於2005年7月16日形成旁支群之後,有三隻成雌猴(其序號分別為:K11-24,K11-28,K11-43),依成雌猴架構中的高、中和低階位序之比為(1/1/1),並造成K主群成雌猴架構中的高、中和低階位序的變動之比為(5/10/9)。
Ia分群於1996年2月3日形成旁支群之後,有三隻成雌猴(其序號分別為:Ia12-2,Ia12-3,Ia12-4),依成雌猴架構中的高、中和低階位序之比為(1/1/1),並造成I主群成雌猴架構中的高、中和低階位序的變動之比為(3/8/7)。
Ic分群於1998年10月4日形成旁支群之後,有八隻成雌猴(其序號分別為:I9-5,I9-6,I9-17,I9-19,I9-1,I9-15, Ic16-3,Ic16-4),依成雌猴架構中的高、中和低階位序之比為(1/4/3),並造成I主群成雌猴架構中的高、中和低階位序的變動之比為(5/10/10)。
Ie分群於2002年12月15日形成旁支群之後,有八隻成雌猴(其序號分別為:I9-4,I9-7,I9-16,I9-18,I9-25,I9-26,I9-35,I9-38),依成雌猴架構中的高、中和低階位序之比為(1/4/3),並造成I主群成雌猴架構中的高、中和低階位序的變動之比為(24/29)。
Ig分群於2003年12月6日形成旁支群之後,有五隻成雌猴(其序號分別為:I9-9,I9-2,I9-22,I9-32,I9-47),依成雌猴架構中的高、中和低階位序之比為(1/2/2),並造成I主群成雌猴架構中的高、中和低階位序的變動之比為(4/9/8)。
Iaa分群於2004年12月25日形成次旁支群之後,有三隻成雌猴(其序號分別為:Ia12-2,Ia12-4,Ia12-14),依成雌猴架構中的高、中和低階位序之比為(1/1/1),並造成I主群成雌猴架構中的高、中和低階位序的變動之比為(2/4/3)。
中低位序成雌猴之位序隨著分群而形成旁支群後,其部份中低位序成雌猴之位序在旁支群中有顯著的增加。二主群成雌位序於中低階的變動平均每群次數為0.85次(± 2.5, n=8),七旁支群及一次旁支群成雌位序於中低階的變動平均每群次數為0.24次(± 1.3, n=8),有顯著的差異(Wilcoxon-Mann-Whitney, P<0.05)(圖 )。
五、主群與旁支群的互動情形
Kb分群於1999年11月7日形成旁支群後與K主群相遇時,K主群"贏"Kb旁支群佔25.38%(100/394),"輸"佔0.00%(0/394),"和"佔74.62%(294/394)。Kc分群於2000年7月2日形成旁支群之後與K主群相遇時,K主群"贏"Kc旁支群佔26.44%(179/677),"輸"佔0.00%(0/677),"和"佔73.56%(498/677)。
Kd分群於2005年7月16日形成旁支群之後與K主群相遇時,K主群與Kd旁支群互動,K主群"贏"K-d旁支群佔24.49%(12/49),"輸"佔0.00%(0/49),"和"佔75.51%(37/49)Ia分群於1996年2月3日形成旁支群之後與I主群相遇時,I主群"贏"Ia旁支群佔23.08%(90/390),"輸"佔0.00%(0/390),"和"佔76.92%(300/390)。
Ic分群於1998年10月4日形成旁支群之後與I主群相遇時,I主群"贏"Ic旁支群佔15.75%(123/781),"輸"佔0.00%(0/781),"和"佔84.25%(658/781)。Ie分群於2002年12月15日形成旁支群之後與I主群相遇時,I主群"贏"Ie旁支群佔14.05%(43/306),"輸"佔0.00%(0/306),"和"佔85.95%(263/306)。
Ig分群於2003年12月6日形成旁支群之後與I主群相遇時,I主群"贏"Ig旁支群佔11.75%(37/315),"輸"佔0%(/315),"和"佔88.25%(278/315)。Iaa分群於2004年12月25日形成次旁支群之後與Ia旁支群相遇時,Ia旁支群"贏"Iaa次旁支群佔0.00%(0/55),"輸"佔30.91%(17/55),"和"佔69.09%(38/55)。
二主群和七旁支群及一旁支群和次旁支群相遇時「贏」的行為平均百分比為3.9%(± 10.9%, n=8),相遇時「輸」的行為平均百分比為17.6%(± 9.1%, n=8),相遇時「和」的行為平均百分比為78.5%(± 6.8%, n=8),有顯著差異(Kruskal-Wallis, P<0.05)(圖 )。二主群和七旁支群及一旁支群和次旁支群相遇時的行為,顯示主群較旁支群佔優勢,其中卻以「和」的頻率為最高。旁支群和次旁支群相遇時的行為則反而次旁支群「贏」旁支群。
六、主群與旁支群對活動地區和夜宿地的利用情形
(一)活動地區的利用情形
K主群主要活動地區利用分別於E4、F3、F4及G4區域,而其Kb旁支群分別於F3、F4區域,其Kc旁支群分別於F3、F4區域及Kd旁支群於F4區域。其中Kb旁支群主要活動區域利用F3、F4區域,Kc旁支群F3、F4區域及Kd旁支群F4區域皆與K主群主要活動地區利用F3、F4區域而重疊。
I主群主要活動地區利用分別於E3、E4、F3、G2、G3、H2、H3、H4、H5 、H6區域,而其Ia旁支群主分別於E2、F2、 F3區域,其Ic旁支群分別於G2、G3、H2、H3、H4區域,其Ie旁支群於G2、G3、H2、H3、H4區域,其I-g旁支群於G2、G3、H2、H3、H4區域及Iaa次旁支群分別於E2、F2及 F3區域。其中Ia旁支群主要活動區域利用F3區域、I-c旁支群G2、G3、H2、H3、H4區域、Ie旁支群G2、G3、H2、H3、H4區域及I-g旁支群G2、G3、H2、H3、H4區域皆與I主群主要活動地區利用F3、G2、G3、H2、H3,H4區域而重疊,而Iaa次旁支群主要活動區域利用E2、F2、 F3區域皆與Ia旁支群E2、F2及 F3區域而重疊。二主群主要活動地區利用較廣闊而七旁支群及一旁支群和次旁支群僅限於二主群主要活動地區利用內。
(二)夜宿地的利用情形
K主群主要夜宿地利用於F4區域,而其Kb旁支群於F4區域,其Kc旁支群於F4區域及K-d旁支群於F4區域。其中Kb旁支群的主要夜宿地利用、Kc旁支群及Kd旁支群與K主群的主要夜宿地利用F4區域而重複。
I主群主要夜宿地利用於H2區域,而其Ic旁支群於H2區域,I-e旁支群於H2區域及Ig旁支群於H2區域。其中Ic旁支群主要夜宿地利用、Ie旁支群及Ig旁支群與I主群的主要夜宿地H2區域而重疊,而Ia旁支群F3區域與Iaa次旁支群F3區域而重複。二主群主要夜宿地利用與六旁支群及一旁支群和次旁支群而重複、重疊,只有 Ia旁支群經八年的時間已形棲地利用上的隔離。
討論
Dittus(1985)對分群原因提出五項假說。這五項假說在本實驗地—壽山地區臺灣獼猴社群之分群過程比較的研究結果中,其分群現象較為符合雌猴在群內的適存性降低(Female fitness loss)假說中,通常具有血緣關係的雌猴所發起的說明,及 Oi(1988)於Yakushima島上觀察日本獼猴社群分群現象中,則是由於群內成年雌猴分裂而形成。
分群多發生於交配季節,造成社群之分群的最佳時機。非交配季亦有分群的情況,此因素可能是交配季是群內、外雄猴間互動的示好期,非交配季是群內、外雄猴對群內雌猴的臣服期。
主群與旁支群的核心雄猴更替時之年齡皆於壯年期,此因素可能是主群核心雄猴更替大多由社群中群內雄猴晉升而旁支群大多是由他群群外雄猴的遷入的產生,是平和而非爭奪行為,可推測並無衰退中的領導雄猴與其他年輕雄猴一同發動分群行為,形成新群的核心的模式。
社群中成雄猴遷出、入的頻繁多發生於交配季,可能造成社群分群的因素,此因素可能造成群內、外雄猴數目的增加,群內、外雄猴可自由的進入社群與成雌猴交配,可提高成雌猴的受孕、避免近親交配。非交配季亦有成雄猴遷出、入的情況,此因素可能是群內、外雄猴位序於交配季時尚未建立其明確性,在非交配季時的遷出、入,並依其遷入日期的先後順序,造成年雄猴優勢階級制度的改變而建立井然的倫理位序。可推測並無多餘雄猴(Surplus maless)的假說。
壽山地區臺灣獼猴二主社群分群時社群的成員數其平均數為74隻,此外尚有七社群的成員數皆超過74隻以上,目前尚未分群。此因素可能是壽山地區獼猴空間活動有足夠承載量、植物物種繁多及分佈廣闊而其可食性植物物種已達300種以上、食昆蟲的物種已達20種以上及食土的頻繁性皆是獼猴食物的來源,可能是造成社群分群的因素,可推測並無失去統合(Loss of coordination)的假說。
壽山地區臺灣獼猴成年雌雄猴性比結果中為2.3:1隻,而雌性數量高於雄性,此因素可能是社群分群後造成族群之社群數的增加,成雄猴於交配季獲得更多交配的機會、或巔峰期成雄猴自由的進入社群與中低位序的雌猴交配,可提高成雌猴的受孕,造成社群分群的因素,可推測並不符合Oi(1988)於Yakushima島上觀察日本獼猴社群分群現象中,並沒有觀察到任何雄猴參與雌猴分群的跡象及推論分群現象是導因於群內雌猴間的敵對行為。
高位序與中低位序成雌猴生育的子代數、生育子代間隔及生育子代存活數並沒有顯著地差異,其可能是壽山地區臺灣獼猴社群之階級制度是井然有序的,可推測並無雌猴在群中的適存性降低(Female fitness loss)的假說。中位序與低位序雌猴生育的子代數及生育子代存活數有顯著地差異,高位序與中、低位序雌猴個體的平均體重有顯著地差異。可推測較為符合雌猴在群中的適存性降低(Female fitness loss)的假說。
壽山地區臺灣獼猴分群的現象目前已有九種模式,九種模式分群現象只有其中一項,較為符合Dittus(1985)雌猴在群內的適存性降低(Female fitness loss)的假說,通常具有血緣關係的雌猴所發起的說明,及 Oi(1988)於Yakushima島上觀察日本獼猴社群分群現象中,則是由於群內成年雌猴分裂而形成,而其餘八項模式分群現象可推測並不符合Oi(1988)於Yakushima島上觀察日本獼猴社群分群現象中,並沒有觀察到任何雄猴參與雌猴分群的跡象及推論分群現象是導因於群內雌猴間的敵對行為,及其歸納出三種已知模式。
壽山地區臺灣獼猴社群分群的過程中,在形成旁支群後,成雌猴所生的嬰猴共有十三隻死亡,而其中有九隻是在分群前即已死亡,分群前成雌猴所生嬰猴的死亡可能是造成分群的因素。在獅群、黑猩猩、恆河猴與日本獼猴社群中,均有出現殺嬰之行為,雄性為增加與雌性交配並增加自己的子代數,因此會對該雄性個體尚未進入社群前出生的幼體殺害,在獅群中,一但幼獅被殺害,雌獅便會立刻發情,並與雄獅發生交配,但成雌猴所生的嬰猴在分群前即已死亡。可推測壽山地區臺灣獼猴無殺嬰行為的存在。
壽山地區臺灣獼猴社群分群的過程中,有五分群中成員有一隻或數隻,分批或整批的成員因返回原主群而造成分群的瓦解。在形成旁支群後,成雌猴有一隻或數隻返回原主群和旁支群間、或成雌猴彼此間具有親緣的母女、姊妹關係,有的留於主群或遷入旁支群及返回原主群和旁支群間。可推測壽山地區臺灣獼猴之社群的組成是由多隻親緣家庭所組成,而避免近親交配,致使遺傳基因的穩定性。如此則較不符合親緣關係稀釋效應(Dilution of kinship)的假說,可推測分群是特殊、自然的現象。
中低位序成雌猴之位序隨著分群而形成旁支群後,其部份中低位序成雌猴之位序在旁支群中有顯著的增加,此現象稍符合Dittus(1985)以toque macaques(M. sinica)作為研究對象的報告中,在分群後的一年間,由主群遷至旁支群的雌猴其位序變化的速度較其在主群時明顯增快,而未參與分群的雌猴則不然。
二主群和七旁支群及一旁支群和次旁支群相遇時的行為,雖顯示主群較旁支群佔優勢,其中卻以「和」的頻率為最高。在「和」的情境下,可推測壽山地區臺灣獼猴社群間是和諧相處,並造成社群間領域、棲地、食物的共享及共同警戒的行為,此與社群的分群似乎無相關性,獼猴社群間共享領域、棲地、食物及共同警戒的行為,可能壽山地區臺灣獼猴的習性是溫馴的,也可推測是造成分群的因素。
主群主要活動地區利用較廣闊而旁支群群、次旁支群僅限於二主群主要活動地區利用內、或主要夜宿地利用與旁支群、次旁支群的主要夜宿地利用而重複、重疊。可推測活動地區利用之界限、間隔及棲地利用的重疊,較不符合生態上的壓力(Ecological stress)的假說。或許是壽山特殊地形和封閉的次島嶼,再加上外圍區域過度的開發,獼猴要活動地區內休息區的林立及獵捕的壓力,反而可能是造成分群的因素。
訂閱:
文章 (Atom)